Variação tafonômica em restos vasculares de dinossauros não-avianos do Mesozoico - Taphonomic variation in vascular remains from Mesozoic non-avian dinosaurs
https://www.nature.com/articles/s41598-025-85497-y
1 -
Taphonomic variation in vascular remains from Mesozoic non-avian dinosaurs
Variação tafonômica em restos vasculares de dinossauros não-avianos do Mesozoico
Resumo
A identidade e a origem de componentes flexíveis, semitransparentes e semelhantes a vasos sanguíneos, recuperados de ossos de dinossauros não-avianos, são debatidas devido a:
(1) tal preservação não ser prevista por modelos de degradação;
(2) os mecanismos tafonômicos para esse tipo de preservação não estarem bem definidos; e
(3) embora a endogeneidade molecular tenha sido demonstrada em espécimes selecionados, dados comparáveis são escassos em uma escala mais ampla.
Neste estudo, utilizamos um conjunto de técnicas micromorfológicas e moleculares para examinar material semelhante a vasos sanguíneos recuperado de restos esqueléticos de seis dinossauros não-avianos, representando diferentes táxons, ambientes deposicionais e idades geológicas, e comparamos os dados obtidos em nossas análises com vasos sanguíneos liberados de ossos de avestruz atuais. Os resultados deste estudo aprofundado e multifacetado apresentam forte suporte para a endogeneidade dos vasos sanguíneos derivados de fósseis, embora também tenhamos detectado evidências de microrganismos invasores.
[Minha observação - IA
A endogeneidade de vasos sanguíneos refere-se à capacidade do próprio organismo de formar, remodelar e controlar sua rede vascular a partir de estímulos internos (sinais químicos, metabólicos e mecânicos), sem intervenção externa direta. Este processo é fundamental para a adaptação tecidual, nutrição, oxigenação e resposta a lesões.
Os principais mecanismos envolvidos são:
Angiogênese (Formação de novos vasos): É o crescimento de novos vasos sanguíneos a partir de vasos preexistentes. Esse processo endógeno é estimulado por fatores como hipóxia (falta de oxigênio), inflamação ou necessidade metabólica aumentada (ex: exercícios físicos intensos que estimulam a formação de vasos nos músculos).
Vasorregulação (Controle do fluxo): Os tecidos controlam o fluxo sanguíneo que recebem com base em suas necessidades metabólicas, alterando o diâmetro dos vasos (vasoconstrição/vasodilatação).
Modelagem de Longo Prazo: Em dias ou meses, o organismo pode aumentar ou diminuir o número e tamanho dos vasos para se adaptar às mudanças de longo prazo no metabolismo de tecidos.
Hemostasia: Quando um vaso é danificado, mecanismos endógenos como a constrição vascular e a formação de coágulos entram em ação para evitar a perda de sangue.
Aplicações Clínicas e Fisiológicas:
Exercício Físico: Estimula a angiogênese para aumentar a difusão de oxigênio nos músculos.
Patologias: A proliferação anormal de vasos (angiogênese desregulada) pode levar à formação de hemangiomas (tumores benignos).
Tecnologia Médica: O estudo da engenharia de tecidos busca mimetizar esses processos endógenos para criar novos tecidos (engenharia tecidual vascularizada).
Jornal da USP]
Conteúdo semelhante sendo visualizado por outras pessoas

Introdução
Tradicionalmente, os paleontólogos dependem de informações anatômicas obtidas a partir de partes duras fossilizadas de animais extintos para compreender a evolução da biosfera. No entanto, o registro geológico também é capaz de uma preservação excepcional e, ocasionalmente, órgãos e tecidos normalmente propensos à decomposição são conservados ao longo de extensos períodos de tempo com um alto grau de fidelidade morfológica (revisado em 1 ). Essas descobertas fornecem informações sobre características que geralmente não estão disponíveis para a comunidade científica e, portanto, são fundamentais para ampliar nossa compreensão das inovações evolutivas, bem como da biologia de organismos extintos.
Os relatos da recuperação de microestruturas consistentes com células e tecidos originais em fósseis de tempos remotos (> 1 milhão de anos) estão aumentando continuamente (por exemplo, 2 , 3 , 4 , 5 , 6 , 7 , 8 , 9 , 10 , 11 , 12 , 13 , 14 , 15 ) e um crescente conjunto de dados sugere que a preservação de tais tecidos 'moles' (ou seja, originalmente não biomineralizados) e das moléculas que outrora os caracterizavam pode ser mais comum do que se pensava anteriormente (revisado em 1 , 16 ). Estruturas semelhantes a órgãos, tecidos e células, morfologicamente consistentes com suas contrapartes atuais, incluindo pele (por exemplo, 10 , 17 , 18 , 19 , 20 , 21 , 22 , 23 , 24 , 25 , 26 ), escamas, penas ou apêndices semelhantes a penas (por exemplo, 12 , 27 , 28 , 29 , 30 , 31 , 32 , 33 , 34 ), osteócitos, condrócitos e outras células (por exemplo, 4 , 35 , 36 , 37 , 38 , 39 , 40 ), foram relatadas em numerosos fósseis de vertebrados do Cenozoico e Mesozoico. Dados moleculares derivados desses espécimes podem potencialmente revolucionar nossa compreensão do passado remoto 41 , 42 .
Existe um amplo consenso na comunidade paleontológica em relação à preservação de polímeros recalcitrantes (por exemplo, pigmentos melânicos) e seus produtos de transformação diagenética no registro geológico 43 , 44 , 45 , 46 , 47. Além de pigmentos 3 , 8 , 9 , 11 , 48 , 49 , 50 , 51 , 52 , 53 , 54 , 55 , evidências de gordura preservada 10 e proteínas, incluindo hemoglobina 41 , 48 , colágeno (por exemplo, 8 , 26 , 56 , 57 , 58 , 59 , 60 ) e queratina 11 , 12 , 61 , 62 , 63 , 64 , 65 também foram relatadas em fósseis de tempos remotos. Entretanto, há muito menos consenso sobre se o DNA, uma biomacromolécula mais informativa, mas mais propensa à degradação, pode sobreviver ao longo do tempo profundo (ou seja, > 1 Ma) (por exemplo, 66 , 67 , 68 , 69 ).
Existe uma relação inversa (e quase irônica) entre a quantidade de informação codificada em uma biomolécula e sua capacidade de persistir ao longo do tempo geológico (por exemplo, 70 ). O DNA carrega a maior parte da informação biológica, contudo, propõe-se que as cadeias de ácidos nucleicos tenham o menor potencial de preservação dentre todas as macromoléculas orgânicas, devido à sua estrutura helicoidal quimicamente frágil 71 , 72 , 73 (mas veja também 6 , 74 ). Assim, os estudos que utilizam DNA antigo estão atualmente limitados aos últimos ~2 milhões de anos.
No outro extremo do espectro, algumas das biomacromoléculas mais duráveis são lipídios e polímeros com esqueletos de carbono termicamente estáveis, como a lignina. A origem orgânica dessas moléculas não é questionada; entretanto, embora relativamente bem representadas no registro fóssil, elas são específicas de um organismo em particular apenas em um nível muito geral 69 . No entanto, os avanços metodológicos na biologia molecular e na bioquímica analítica têm proporcionado um acesso crescente a uma nova fonte de informação geobiologicamente relevante: compostos orgânicos primários recuperados de fósseis corporais 10 , 75 , 76 , 77 , 78 , 79 .
As tentativas de investigar resíduos proteicos em restos animais com mais de alguns milhões de anos têm sido, até agora, assoladas por obstáculos, incluindo: (1) dificuldades na identificação devido à alteração diagenética; (2) falta de informações relevantes em bancos de dados para táxons filogeneticamente distantes de animais vivos; (3) ausência de protocolos analíticos padronizados para excluir fontes alternativas (contaminantes) para os peptídeos detectados; (4) discrepâncias entre modelos cinéticos de degradação de biomoléculas e dados empíricos de fósseis; e (5) compreensão incompleta dos mecanismos de estabilização que poderiam explicar a conservação de biomoléculas informativas em fósseis com milhões de anos 66 , 68 , 80 , 81 , 82.
Essas dificuldades levaram a uma diversidade de opiniões sobre o que de fato está preservado. Além disso, questões sobre como os componentes recuperados foram modificados em relação à sua composição e estrutura originais, que informações podem ser obtidas a partir desses “fósseis” moleculares e como estes podem ser caracterizados ainda estão sendo debatidas 68 , 83 , 84 , 85 , 86. Essa controvérsia é lamentável, pois os tecidos moles e as moléculas que os compõem, se analisados e interpretados adequadamente, possuem grande potencial para ampliar nossa compreensão da evolução molecular em tempos remotos.
Embora um crescente conjunto de dados apoie a preservação de peptídeos originais em fósseis com milhões de anos (por exemplo, 14 , 15 , 87 , 88 , 89 ), o ceticismo persiste porque alguns pesquisadores consideram as cadeias de aminoácidos constituintes muito frágeis para resistir ao teste do tempo (por exemplo, 90 , 91 , 92 ) ou, inversamente, convertidas em geomoléculas altamente condensadas e em sua maioria desfuncionalizadas (por exemplo, 55 , 93 ).
Portanto, para testar se tecidos e biomoléculas (proteínas) supostamente propensos à degradação, sob certas condições, podem sobreviver ao longo de extensos períodos de tempo, comparamos a composição morfológica e química de microestruturas ocas, semelhantes a vasos sanguíneos (doravante denominadas "vasos", por questões de espaço e simplicidade), isoladas de seis dinossauros não-avianos e de uma avestruz atual (ver Informações Suplementares e Tabela Suplementar S1 ). O material fóssil incluía táxons filogeneticamente distintos (isto é, dinossauros ornitísquios e saurísquios) e diferiam em localização geográfica, ambiente deposicional e idade geológica.
Empregamos múltiplos métodos analíticos para determinar a integridade histológica e a composição molecular dos vasos, partindo do princípio de que, se endógenos, deveriam apresentar pelo menos algumas semelhanças com vasos derivados de ossos de indivíduos atuais. Utilizamos dados obtidos desses vasos mesozoicos para testar as seguintes hipóteses: (1) os vasos são endógenos aos dinossauros dos quais derivam; (2) os ambientes deposicionais são preditores da preservação vascular; e (3) a integridade vascular em fósseis não depende da idade geológica ou do táxon.
Nossa abordagem experimental abrangente revelou uma mistura complexa de compostos orgânicos endógenos derivados de dinossauros, revestimentos minerais/estruturas de substituição e microorganismos invasores, com implicações não apenas para a tafonomia de tecidos vasculares, mas também para inferências sobre potenciais sinais filogenéticos, metabólicos e fisiológicos retidos em tecidos duros de vertebrados (por exemplo, 55 , 93 , 94 ).
Composição e estrutura dos vasos sanguíneos existentes
Os vasos sanguíneos em organismos vivos são compostos por três camadas principais, incluindo (do lúmen para o exterior): um revestimento endotelial (túnica íntima), uma camada de músculo liso (túnica média) e tecido conjuntivo externo (túnica adventícia ou externa; Informações suplementares, Fig. S1 ) 95. As extensões citoplasmáticas das células endoteliais são normalmente muito finas, mas unidas por junções estreitas para formar a túnica íntima 96. Os núcleos das células endoteliais projetam-se para o lúmen vascular 97 e contêm um complemento completo de DNA 98. As células endoteliais também produzem uma membrana basal que forma uma camada relativamente impermeável na maioria dos vasos 95 ; esta membrana é composta por proteínas estruturais, incluindo elastina e laminina 99 , 99 , 100 , 101 , 103 .
A laminina contribui para a impermeabilidade da parede do vaso 104 , enquanto a elastina proporciona resiliência, permitindo assim que os vasos respondam às alterações da pressão sanguínea (por exemplo, 105 ). Notavelmente, esta última proteína de longa duração 106 , 107 contém o aminoácido desmosina, que é exclusivo da proteína elastina 108 , 109. Portanto, a localização de anticorpos contra laminina, elastina e/ou desmosina na parede desses vasos antigos fornece forte evidência da endogeneidade desses restos vasculares.
Externamente ao endotélio e à sua membrana basal encontra-se uma camada de células musculares lisas. Esta pode consistir numa única camada de células nos vasos mais pequenos ou em múltiplas camadas nos vasos maiores, formando a túnica média; assim, as proteínas contráteis padrão (miosina, tropomiosina) localizam-se nesta camada 95 , 110 , 111. A elastina também é secretada pelas células musculares lisas da túnica média 98 , 112 .
A camada mais externa dos vasos, a túnica adventícia, é composta de tecido conjuntivo. Esta camada é rica em colágenos fibrilares, mas elastina, nervos, pequenos capilares e glicosaminoglicanos também estão distribuídos aqui 95 , 98 , 107 , 109 , 113 .
Justificativa para a abordagem experimental na caracterização de restos orgânicos antigos
Como os vasos sanguíneos atuais são heterogêneos e compostos por diferentes proteínas, esse conhecimento nos forneceu alvos analíticos, dependendo da camada analisada (Figura S1 das Informações Suplementares ). Previmos que, embora nem todas as camadas estejam representadas ou possam não ser facilmente distinguidas em vasos de dinossauros de 80 a 66 milhões de anos, pelo menos alguns desses componentes deveriam ser detectáveis em restos vasculares fossilizados, caso fossem endógenos.
Além disso, previmos que seria provável que esses vasos também apresentassem um componente microbiano ou fúngico, antigo ou moderno, após milhões de anos em ambientes geoquimicamente ativos. Portanto, escolhemos métodos analíticos que pudessem discriminar entre essas fontes.
Materiais e métodos
Coleta de vasos sanguíneos
Fragmentos de osso cortical, coletados de ossos intactos durante a escavação (MOR 1125, MOR 2598, MOR 10857) ou de fragmentos menores isolados durante a escavação e/ou preparação (MOR 555/USNM 555000, MOR 1126, MOR 1128) de quatro espécimes de Tyrannosaurus rex (MOR 555/USNM 555000, MOR 1125, MOR 1126, MOR 1128), Brachylophosaurus canadensis (MOR 2598) e um ceratopsídeo indeterminado (MOR 10857) (Tabela S1 ) foram desmineralizados em ácido etilenodiaminotetracético (EDTA) (500 mM, pH 8,0) por pelo menos 2 semanas com trocas diárias de tampão. Os vasos liberados foram coletados e lavados com água ultrapura para remover o EDTA residual, visando a obtenção de imagens por microscopia de luz e tratamentos posteriores.
Pequenos fragmentos de osso longo de avestruz (excisados em 26/09/2004, incubados com 10% de Zout (Dial Corp.) para desengorduramento e armazenados em dessecador com um pó antifúngico por aproximadamente 17 anos) foram desmineralizados com EDTA 0,5 M, pH 8,0, até que a maior parte da fase mineral fosse removida e os tecidos restantes ficassem maleáveis.
O osso desmineralizado foi então cortado em fatias de 0,5 a 1 mm com uma lâmina de barbear estéril e lavado com água ultrapura cerca de 10 vezes para remover completamente o EDTA. Após esse tratamento, as fatias de osso foram digeridas com 1 mg/mL de colagenase A (Roche10103578001) em solução salina tamponada com fosfato de Dulbecco (D-PBS), pH 7,2 (com adição de 0,1 g/L de cloreto de cálcio e 0,1 g/L de cloreto de magnésio) a 37 °C durante a noite ou até que a matriz de colágeno fosse completamente removida.
Os vasos restantes foram coletados sob ampliação e lavados com água ultrapura para remover a colagenase residual, sendo então incubados por 1 hora à temperatura ambiente em formalina tamponada neutra a 10% para inclusão.
Microscopia de luz transmitida (LM)
Os vasos liberados e preparados conforme descrito acima foram examinados com um microscópio biológico Zeiss Stemi-2000-C ou Zeiss Axioskop 2 plus, e as imagens foram capturadas usando uma AxioCam MRc 5 (Zeiss) no pacote de software Axiovision (versão 4.7.0.0).
Microscopia eletrônica de varredura (MEV)
Vasos antigos e vasos de avestruz fixados em formalina a 10% foram desidratados com uma série gradual de etanol. Em seguida, as amostras foram transportadas para o laboratório principal de Análise e Nanofabricação de Chapel Hill (CHANL), onde foram submetidas à secagem por ponto crítico (Tousimis Semidri PVT-3) e revestidas por pulverização catódica (Cressington 108 Auto) com aproximadamente 70 angstroms de paládio-ouro. As amostras preparadas foram então analisadas utilizando um microscópio eletrônico de varredura com emissão de campo por cátodo frio (FEG-SEM) Hitachi S-4700 do CHANL, com uma tensão de aceleração de 5 kEV.
Além dos vasos recuperados conforme descrito acima, também utilizamos vasos de Tyrannosaurus rex (MOR 1125) que foram coletados e liofilizados em 2006 e armazenados a −90 °C até o uso. Eles foram trazidos à temperatura ambiente em PBS, montados em suportes com fita de carbono dupla face e também analisados por MEV, conforme descrito anteriormente.
Microscopia eletrônica de transmissão (MET)
Vasos isolados de cada espécime de dinossauro foram incubados em uma solução de piridoxal isonicotinoil hidrazona (PIH) (5 mM PIH em 50 mM NaOH) 114 durante a noite à temperatura ambiente para quelar o excesso de ferro dos tecidos recuperados e, em seguida, lavados com água ultrapura. Vasos antigos tratados com PIH e vasos de avestruz fixados em formalina a 10% foram primeiro incluídos em ágar a 3% para estabilizar os tecidos, seguidos de inclusão em resina LR White após desidratação parcial em etanol a 70% e infiltração com meio de inclusão permeável à água LR White puro, conforme descrito anteriormente 80 , 115 .
Secções com 90 nm de espessura foram cortadas num ultramicrótomo Leica EM UC6, montadas em grelhas de níquel revestidas com carbono (EMS Cat CFT200-NI) e coradas com acetato de uranilo metanólico a 5% durante 5 minutos e com citrato de chumbo de Reynolds durante 8 minutos, sendo posteriormente observadas utilizando o microscópio eletrónico Talos F200X G2 nas instalações de instrumentação analítica (AIF) da Universidade Estadual da Carolina do Norte.
Nanotomografia computadorizada (nano-CT)
Como os vasos sanguíneos de avestruz não são mineralizados em vida, são difíceis de visualizar sem coloração. Portanto, coramos esses vasos existentes com uma solução aquosa de I₂KI a 2,5% ( I₂KI : uma parte de iodo para duas partes de iodeto de potássio em solução aquosa) por 2 × 72 h. Para preparar uma solução-mãe de I₂KI a 5%, primeiro dissolvemos 10% p/v de iodeto de potássio em água ultrapura até obter uma solução transparente e, em seguida, adicionamos 5% p/v de iodo elementar à mesma solução. Diluímos então a solução-mãe para 2,5% de I₂KI com água pura.
Vasos antigos coletados conforme descrito acima e vasos de avestruz corados foram incluídos e estabilizados com ágar a 3% em tubos de centrífuga de 1,5 ml, escaneados com uma voltagem de 80 kV e uma potência de 7 W no sistema de tomografia de raios X 3D Zeiss Xradia 510 Versa, na Unidade de Imagem Analítica (AIF) da Universidade Estadual da Carolina do Norte.
Imuno-histoquímica
Imunofluorescência
Secções de 200 nm de espessura de vasos sanguíneos embebidos em LR White, preparados conforme descrito acima, foram obtidas em um ultramicrótomo Leica EM UC6 e secas durante a noite a 45 °C em cada poço de uma lâmina revestida com Teflon (Electron Microscopy Sciences). A recuperação antigênica e o bloqueio da autofluorescência foram realizados por meio de ataque químico com Proteinase K (grau PCR, Roche, 25 µg/ml) em solução salina tamponada com fosfato (PBS) 1× a 37 °C por 15 min, incubadas em EDTA 500 mM pH 8,0 por 30 min, seguidas por duas incubações em borohidreto de sódio (NaBH₄) 1 mg/ml por 10 min cada. As incubações foram interrompidas por duas lavagens de 5 min em PBS.
A ligação espúria foi inibida pela aplicação de soro de cabra normal (SCN) a 4% nas secções por 2 h à temperatura ambiente. As secções foram incubadas durante a noite a 4 °C em anticorpo primário (Tabela S2A) diluído até à concentração final em tampão de diluição primária, constituído por 1% de albumina de soro bovino (BSA) (Fisher, BP1660-100), 0,1% de gelatina de pele de peixe fria (Sigma G7765), 0,05% de azida sódica (Sigma S-8032) e 0,01 M de PBS pH 7,2), ou em tampão de diluição primária sem anticorpos adicionados, para controlo da ligação não específica do anticorpo secundário.
Os anticorpos anti-elastina e anti-desmosina também foram diluídos a 1:75 e incubados com 16 mg de elastina ou 10 mg de desmosina (Tabela S2B) para inibir a ligação através do bloqueio do sítio de ligação do anticorpo. Estes anticorpos bloqueados foram então aplicados às secções, como descrito acima, para testar a especificidade dos mesmos. Todas as secções, incluindo os controlos, foram incubadas durante 2 h em anticorpo secundário (IgG(H + L) anti-coelho biotinilada de cabra (Vector BA-1000) diluída a 1:500 para anticorpos primários de coelho, IgG(H + L) anti-rato biotinilada de cabra (Vector BA-9200), diluída a 1:500 para anticorpo monoclonal anti-peptidoglicano de rato). As secções foram então incubadas com Fluoresceína Avidina D (FITC, Vector Laboratories A-2001) durante 1 h à temperatura ambiente.
Todas as incubações foram interrompidas por lavagens sequenciais (2 × 10 min cada) em PBS com Tween 20, seguidas de duas lavagens de 10 min em PBS. Finalmente, as secções foram montadas com meio de montagem Vectashield H-1000 e foram aplicadas lamínulas. As secções foram examinadas com um microscópio biológico Zeiss Axioskop 2 plus e as imagens foram capturadas utilizando uma câmara AxioCam MRc 5. (Zeiss) com ampliação ocular de ×10 no Axioskop 2 plus no pacote de software Axiovision (versão 4.7.0.0).
Marcação imunogold (IG)
Vasos antigos e vasos de avestruz atuais também foram submetidos à marcação com ouro coloidal (IG) para demonstrar complexos antígeno-anticorpo em tecidos com maior resolução. Seções de 90 nm de espessura de vasos embebidos em LR White (descritos acima) foram coletadas em grades de níquel revestidas com carbono (EMS Cat CFT200-NI), incubadas em gotas de PBS-Tween 20 por 10 minutos. Soro de burro normal (NDS) a 5% foi aplicado para ocupar sítios de ligação não específicos e prevenir ligações espúrias, e incubado por 1 hora à temperatura ambiente.
As seções nas grades foram então incubadas com o anticorpo primário, diluído 1:10 em tampão de diluição primária, conforme descrito, por 3 horas à temperatura ambiente. As seções foram lavadas com TBS-Tween 10 vezes por 2 minutos. Todas as grades foram então incubadas com anticorpos secundários (12 nm Colloidal Gold AffiniPure Donkey Anti-Rabbit IgG (H + L) 1:20 (Jackson Immuno Research Inc., Cat 715-205-152) em tampão de diluição secundária por 1 h.
As grades foram então lavadas com PBS-Tween20 por 10 × 2 min, seguidas por lavagens com água ultrapura 3 × 30 s e secas com papel de filtro. As seções foram coradas com acetato de uranila metanólico a 5% por 5 min e citrato de chumbo de Reynolds por 8 min, e então observadas usando o microscópio eletrônico Talos F200X G2 no AIF da Universidade Estadual da Carolina do Norte.
Coloração com azul de algodão lactofenol (LPCB)
Vasos antigos e diversas amostras de fungos/biofilme de lagoa foram corados com LPCB para detectar a influência fúngica e diferenciar as estruturas vasculares das hifas fúngicas invasoras. Uma gota de solução de Azul de Algodão Lactofenol (Sigma 61335) foi colocada em uma lâmina de vidro.
Vasos de cada dinossauro, isolados e recuperados conforme descrito anteriormente, foram transferidos para a gota de corante. As amostras foram então cobertas com uma lamínula. Após aproximadamente 5 minutos, as lâminas foram examinadas com um microscópio biológico Zeiss Axioskop 2 plus e as imagens foram capturadas usando uma câmera AxioCam MRc 5 (Zeiss) com ampliação ocular de 10x no Axioskop 2 plus, utilizando o software Axiovision (versão 4.7.0.0).
Espectrometria de massa de íons secundários por tempo de voo (ToF-SIMS) combinada com microscopia eletrônica de varredura (MEV)
A espectrometria de massa de íons secundários por tempo de voo (ToF-SIMS) fornece dados de espectrometria de massa com resolução espacial de superfícies sólidas, bombardeando a amostra com íons de alta energia (primários) em um feixe focalizado e analisando os íons emitidos (secundários) usando um analisador de massa por tempo de voo.
Ao varrer o feixe de íons primários sobre a superfície da amostra e adquirir espectros de massa separados de cada pixel, os resultados podem ser apresentados como imagens de íons que mostram a distribuição lateral de íons secundários associados a estruturas moleculares específicas, ou como espectros de massa de regiões de interesse (ROIs) selecionadas dentro da área de análise.
Vasos sanguíneos de dinossauros, preparados por desmineralização em EDTA e suspensos em água deionizada (como descrito acima), foram depositados em substratos de silício limpos utilizando uma pipeta e deixados secar ao ar. Em seguida, foram imediatamente montados no porta-amostras e introduzidos no instrumento ToF-SIMS. As análises ToF-SIMS foram realizadas em um instrumento TOFSIMSIV (IONTOF GmbH, Münster, Alemanha) utilizando íons primários Bi³⁺ de 25 keV e injeção de elétrons de baixa energia para compensação de carga.
Os dados de íons positivos e negativos foram adquiridos no regime SIMS estático com o instrumento otimizado para alta resolução de massa (m/Δm = 3000–5000, resolução lateral de 3–5 μm) ou alta resolução lateral (m/Δm = 300, resolução lateral de 0,5–1 μm). Apenas os dados de íons positivos são apresentados aqui, visto que os dados de íons negativos fornecem apenas informações limitadas sobre a estrutura molecular da proteína ( 116 ).
A calibração de massa dos espectros de íons positivos foi realizada utilizando CH₃ +, C₂H₃+ , C₃H₃+ , C₄H₅ + e C₅H₅ + . Espectros de referência ToF - SIMS de amostras de proteínas puras foram adquiridos com alta resolução de massa para colágeno, elastina, hemoglobina e queratina (Sigma-Aldrich) .
A atribuição dos picos nos espectros fósseis aos principais íons orgânicos contendo N característicos das proteínas; ou seja, CH 4 N + , C 2 H 6 N + , C 4 H 8 N + , C 4 H 10 N + , C 5 H 10 N + , C 5 H 12 N + e C 8 H 10 N + ( 116 , 116 , 117 , 119 ), foi baseada na estreita concordância m/z com os picos correspondentes nos espectros de referência de proteínas e com os valores teóricos de massa iônica (Informações Suplementares Fig. S7 a).
As imagens de íons (Fig. 5 a, b e Informações Suplementares, Fig. S8 a, b–12a, b) mostram as intensidades de sinal adicionadas para Fe + +FeOH + +Fe 3 O 3 + em vermelho (representando óxido/fosfato de ferro), CH 4 N + +C 2 H 6 N + +C 4 H 8 N + +C 5 H 10 N + +C 5 H 12 N + em verde (representando proteínas) e Si + +SiOH + em azul (representando o substrato de silício).
A análise de componentes principais (PCA) incluiu as intensidades de pico normalizadas dos íons associados às proteínas nos espectros das regiões de interesse (ROIs) ricas em proteínas nas superfícies das amostras fósseis e nas referências de proteínas, e foi realizada com o software Solo (versão 7.9, Eigenvector Research, Inc., EUA) usando escalonamento de Poisson e centralização da média como pré-preparação.
As intensidades de pico dos íons associados às proteínas foram normalizadas pelas intensidades adicionadas dos picos incluídos, antes da PCA, bem como para as distribuições de intensidade apresentadas nas Informações Suplementares, Fig. S7 b, c.
Após a análise por ToF-SIMS, as amostras fósseis foram revestidas com uma película condutora de Au/Pd de 15 nm de espessura e imageadas em um microscópio eletrônico de varredura de emissão de campo (FEG-SEM) Zeiss Supra 40VP, com energia eletrônica de 2 keV, utilizando um detector de elétrons secundários do tipo Everhardt-Thornley (SE2).
A navegação até as áreas analisadas por ToF-SIMS foi realizada utilizando imagens de microscopia óptica (MO) da superfície das amostras e as coordenadas salvas para as medições de ToF-SIMS. As micrografias de FEG-SEM foram combinadas com as imagens de íons obtidas por ToF-SIMS das mesmas áreas das amostras utilizando o PowerPoint (Microsoft Inc., EUA).
As imagens sobrepostas foram geradas sobrepondo-se imagens de íons semitransparentes às micrografias de FEG-SEM e, em seguida, ajustando-se manualmente o tamanho e a orientação da imagem de íons para obter uma boa correspondência, utilizando características/pontos de referência estruturais evidentes nas imagens de FEG-SEM e ToF-SIMS. No entanto, variações topográficas nas superfícies das amostras, em combinação com o ângulo de incidência de 45° do feixe de íons primários da medição de imagem ToF-SIMS, às vezes resultavam em pequenas discrepâncias em partes das imagens combinadas.
Resultados
LM
Em microscopia óptica, tanto os vasos modernos quanto os fósseis apresentaram paredes intactas e coesas circundando um lúmen oco (Informações Suplementares, Fig. S2 a-u). Além disso, a maioria dos vasos de dinossauros manteve a interconectividade e demonstrou ramificações afiladas (Informações Suplementares, Fig. S2 a, e, l, r, u, setas) e, em alguns casos, anastomoses (Informações Suplementares, Fig. S2 f, h, u, pontas de seta), consistentes com a vasculatura atual 120 , 121. Independentemente do táxon, da idade geológica e do ambiente deposicional (Informações Suplementares, Tabela S1 ), todos os vasos foram preservados adicionalmente em três dimensões e exibiram regiões translúcidas e opacas, bem como conteúdo intravascular ocasional.
MEV (Microscopia Eletrônica de Varredura)
A microscopia eletrônica de varredura (MEV) dos vasos (Fig. 1 a–bb) corroborou a natureza oca e a integridade das paredes dos vasos de cada dinossauro. Além disso, esses vasos se ramificam e se afilam, como nos vertebrados atuais, e, em alguns casos, deram origem a complexos de vasos menores (Fig. 1 e). As texturas externas em todos os casos, exceto no MOR 1128 (Fig. 1 u–x), diferem das superfícies luminais (Fig. 1 k; veja também as Figs. 22 e 23 na ref. 122 ).
Esse padrão também é observado nos vasos de avestruz (Fig. 1 z, aa, bb), e sua textura estriada característica é consistente com o colágeno remanescente da túnica externa. A superfície estriada e pontilhada observada nas Figs. 1 z, aa e bb da avestruz é praticamente idêntica à textura externa dos vasos de dinossauro nas Figs. 1 a, f, i, j, m, n e q. Osteócitos (Fig. 1 a, b, r, s, setas) podiam ser ocasionalmente observados nas superfícies vasculares. Alguns vasos possuíam pequenos vasos acessórios (Fig. 1 o*, t,*).
Após o isolamento, os vasos mantiveram seu caráter tridimensional, em vez de colapsarem após a remoção do substrato mineral, o que é consistente com a presença de um complexo elastina-colágeno<sup> 123</sup> , mineralização secundária ou uma combinação de ambos. O vaso MOR 1128 (Fig. 1 u–x) era qualitativamente diferente dos demais, apresentando degradação muito maior e pouca heterogeneidade estrutural.

Imagens de MEV (Microscopia Eletrônica de Varredura) de vasos sanguíneos recuperados de ossos de dinossauros não-aviários e avestruzes. a – d , MOR 2598, B. canadensis ; e – h , MOR 10857, ceratopsiano; i – l , MOR 555/USNM 555000, T. rex ; m – p , MOR 1125, T. rex ; q – t , MOR 1126, T. rex ; u – x , MOR 1128, T. rex ; y – bb , avestruz atual. Os asteriscos (*) indicam vasos acessórios e as setas marcam osteócitos aparentes nas superfícies externas dos vasos. Observe que todos os vasos apresentam um padrão de ramificação e lúmen aberto. As barras de escala estão indicadas.
TEM
Utilizamos microscopia eletrônica de transmissão (MET) para obter imagens de alta magnificação e alta resolução das paredes dos vasos de cada espécime de dinossauro (Fig. 2 a–l) e, em seguida, comparamos essas imagens com os vasos, osteócitos e matriz extracelular (MEC) correspondentes de ossos de avestruz atuais (Fig. 2 m, n). A micromorfologia foi semelhante à do endotélio atual e, em alguns casos, uma estrutura morfologicamente consistente com uma protuberância nuclear (PN) endotelial pôde ser observada estendendo-se para o lúmen (por exemplo, Fig. 2 a, c, d, g), como visto em vasos de avestruz atuais (Fig. 2 m, n).
Além disso, os vasos de dinossauro apresentaram uma arquitetura de parede complexa com densidade variável e extensões citoplasmáticas aparentemente adelgaçadas. Uma distinta acumulação de estruturas semelhantes a fibras na superfície externa de algumas paredes dos vasos (Fig. 2 j, seta) é observada em alta magnificação, sugerindo a presença de fibras de elastina. Notavelmente, a preservação difere em MOR 1128, com os vasos exibindo uma morfologia mais cristalina e sem variação estrutural (Fig. 2 k, l).
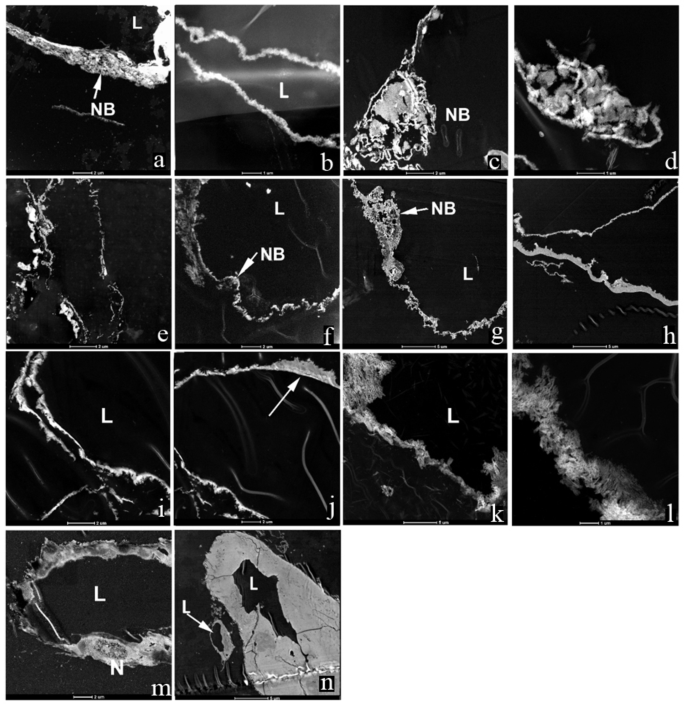
Imagens TEM de a,b ; MOR 2598; c,d ; MOR 10857; e,f ; MOR 555/USNM 555000; g,h ; MOR 1125; i,j ; MOR 1126; k,l ; MOR 1128; m,n ; S. camelus (avestruz). L, Lúmen; NB, Protuberância nuclear. A seta em j mostra fibras na camada adjacente ao lúmen. Barra de escala conforme indicado.
nano-CT
Para melhor visualizar a composição e a estratificação das paredes dos vasos derivados de fósseis em três dimensões, empregamos nano-CT de alta resolução para isolar vasos de cada espécime de dinossauro (Fig. 3 a–i). A nano-CT confirmou a complexidade da maioria das paredes dos vasos de dinossauros, destacando a variação estrutural e de densidade, que foi mais evidente na seção transversal (Fig. 3 b). A camada mais interna era densa e contínua, consistente com o endotélio e a membrana basal adjacente. No entanto, as camadas externas distais ao lúmen são menos densas, semelhantes à túnica adventícia de vasos atuais 124 , 124 , 126 , que é composta por camadas de tecido conjuntivo denso e frouxo (Informações Suplementares Fig. S1 e 127 ).
Pequenas estruturas arredondadas (Fig. 3 b, setas) projetam-se para o lúmen em algumas imagens, semelhantes aos dados de MET. Em alguns casos, estruturas arredondadas densas (Fig. 3 a, c) podem ser vistas preenchendo o lúmen do vaso. Os vasos do ceratopsiano (MOR 10857; Fig. 3d ) parecem mais densos e menos transparentes, sendo mais semelhantes aos vasos do espécime de T. rex MOR 1126 (Fig. 3g ) do que os demais espécimes examinados. Três vasos do MOR 555/USNM 555000 são mostrados na Fig. 3e . Essas vistas longitudinais mostram uma camada interna densa e contínua delimitando o lúmen, com características originadas dessa camada que sugerem variação na densidade e espessura da parede do vaso. Os vasos do MOR 1125 (Fig. 3f ) são longos e ramificados, dando origem a vasos menores.
O revestimento é contínuo e os vasos são preenchidos com material visualmente distinto das paredes dos vasos. Os vasos do MOR 1126 (Fig. 3g ) eram histologicamente/morfologicamente semelhantes aos vasos do ceratopsiano (Fig. 3d ). Ambos pareciam espessos e densos, talvez após incrustação com um material derivado do ferro, como observado anteriormente 41 , 80 , 128. Em MOR 1128 (Fig. 3 h), os vasos estavam menos bem preservados, mais homogêneos e mais friáveis do que em outros espécimes.
Os vasos de avestruz (Fig. 3 i) compartilhavam características com os vasos de dinossauro; no entanto, as paredes eram mais espessas e apresentavam estruturas mais ramificadas. O grande vaso central era menos transparente que os menores, talvez refletindo uma túnica média mais espessa. Os vasos de avestruz menores são semelhantes em estrutura e densidade à maioria dos vasos de dinossauro ilustrados.
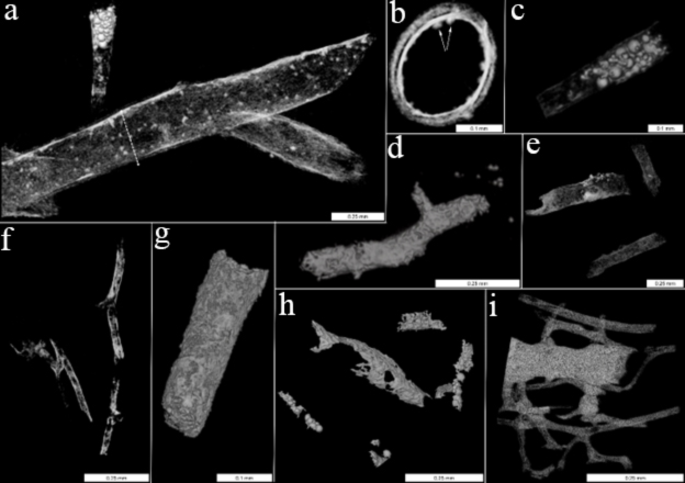
Imagens representativas de nano-CT de vasos sanguíneos de dinossauros. a – c , MOR 2598. a , visão geral, mostrando um vaso menor contendo abundantes esferas arredondadas. b , seção transversal, obtida no nível da linha tracejada em a . c , inclusões vasculares de MOR 2598. d , MOR 10857 mostrando textura superficial heterogênea e ramificação dos vasos; e , MOR 555/USNM 555000 mostra paredes vasculares complexas com densidade variável; f , vasos de MOR 1125 são longos, ocos e mostram pontos de ramificação para vasos menores; g , MOR 1126 possui camada externa densa, possivelmente indicando incrustação; h , vasos de MOR 1128 são altamente fraturados, com o vaso no canto inferior esquerdo contendo inclusões vasculares esféricas densas; i. Vasos liberados de avestruz atual ( S. camelus ) mostram maior interconectividade e mais ramificação da rede vascular. As barras de escala estão indicadas.
Ensaios imunológicos e histoquímicos
Para determinar a composição molecular das paredes dos vasos, empregamos dois métodos imunológicos que localizam complexos antígeno-anticorpo nos vasos: imuno-histoquímica (IHC, Fig. 4 a-bb, Figuras S3 e S4 do Material Suplementar ) e marcação com ouro coloidal (IG, Figura S6 do Material Suplementar ). A Figura 4 mostra a ligação de anticorpos contra elastina (coluna 1), tropomiosina (coluna 2) e laminina (coluna 3) — todos componentes conhecidos dos vasos sanguíneos de vertebrados — e contra uma hemoglobina aviária (coluna 4), que pode se depositar nas paredes dos vasos após a lise de eritrócitos post-mortem . Todos os vasos mostram a ligação mais intensa à elastina, uma proteína de longa duração; no entanto, também foi possível observar a ligação da tropomiosina e da laminina.

Dados de imuno-histoquímica in situ (IHC) obtidos em canais duplos (luz transmitida e FITC), onde os complexos anticorpo-antígeno são visualizados por fluorescência e localizados nas paredes dos vasos. a – d , MOR 2598; e – h , MOR 10857; i – l , MOR 555/USNM 555000; m – p , MOR 1125; q – t , MOR 1126; u – x , MOR 1128; y – bb , avestruz. Coluna 1: tecidos expostos a anticorpos anti-elastina (ver Informações Suplementares para descrição e caracterização); Coluna 2: expostos a anticorpos anti-tropomiosina; Coluna 3: expostos a anticorpos anti-laminina; e Coluna 4: expostos a anticorpos anti-hemoglobina de avestruz. Todos os dados fósseis foram coletados sob os mesmos parâmetros, permitindo a comparação direta da força/avididade de ligação. As setas indicam regiões de cristalinidade. Barras de escala: 20 μm.
Os vasos sanguíneos de avestruz reagiram fortemente aos anticorpos anti-hemoglobina de avestruz (Fig. 4 bb), mas os vasos de dinossauro apresentaram reatividade à hemoglobina variável. MOR 2598 e MOR 555/USNM 555.000 (Fig. 4 d, l) mostraram alguma reatividade à hemoglobina, mas MOR1125 e MOR 1126 (Fig. 4 p, t) não apresentaram nenhuma.
Um material cristalino marrom-escuro, presumivelmente um precipitado de ferro, estava associado a alguns vasos (Fig. 4 , setas vermelhas), como relatado anteriormente 41 , 80 , 128. A ligação de anticorpos foi bastante reduzida nas áreas cristalinas, mas alguma ligação foi observada em uma região translúcida adjacente à camada mineral.
Para validar independentemente a presença de elastina (Fig. 4 ), aplicamos anticorpos contra desmosina, um aminoácido intimamente envolvido na ligação cruzada da elastina, em vasos sanguíneos existentes (Informações Suplementares Fig. S3 ) 129. A avidez de ligação variou entre os espécimes, mas em todos os casos, a ligação aos vasos de avestruz foi muito mais intensa, como esperado.
Os controles negativos, que consistem em (1) omissão do anticorpo primário para controlar a ligação espúria do anticorpo secundário ou do marcador; e (2) exposição dos vasos a anticorpos contra peptidoglicano, para controlar a presença de bactérias, são mostrados na Figura S4 das Informações Suplementares . Em um segundo conjunto de controles negativos, expusemos todos os vasos ao azul de algodão lactofenol (Figura S5 a-i das Informações Suplementares), que reconhece polissacarídeos bacterianos e fúngicos <sup> 130,131 </sup> .
Observamos alguma coloração altamente localizada em alguns vasos antigos associados a filamentos semelhantes a hifas, por exemplo, como visto em MOR 10857 (Figura S5b das Informações Suplementares , setas). A coloração ficou limitada a estruturas muito menores e/ou septadas dentro dos vasos maiores, quando visíveis. A maioria dos vasos, no entanto, não apresentou reatividade.
Utilizando o mesmo conjunto de anticorpos descrito acima, aplicamos um anticorpo secundário ligado a pequenas esferas de ouro eletrodensas para detectar a ligação in situ com maior resolução. A Figura Suplementar S6 a-bb mostra a localização dos complexos anticorpo-antígeno (ab-ag) em regiões específicas dos tecidos vasculares. Apenas os dados para anticorpos anti-elastina são apresentados, pois a ligação anti-elastina foi maior em outros ensaios. As imagens foram obtidas utilizando microscopia de campo claro (BF, Figura Suplementar S6 , primeira e terceira colunas) e microscopia de campo escuro anular de alto ângulo (HAADF, Figura Suplementar S6 , segunda e quarta colunas) em ampliações menores e maiores.
Em ampliações maiores, pequenos filamentos eletrodensos podem ser observados na superfície externa da parede vascular de MOR 2598 (Figura Suplementar S6c, setas). Os anticorpos anti-elastina marcados ligam-se preferencialmente a essa camada. A Figura Suplementar S6e-h representa vasos recuperados de MOR 10.857. Sob alta magnificação (Figura S6g, h das Informações Suplementares), as esferas se alinham apenas em um lado da parede do vaso, mas a ligação não é indiscriminada nem inespecífica, e mostra ligação limitada ou nenhuma ligação a outras estruturas, corroborando a presença de epítopos de elastina e a especificidade do anticorpo. Os vasos de MOR 555/USNM 555000 (Figura S6i–l das Informações Suplementares) mostram ligação limitada a esses anticorpos.
Esses vasos são cristalinos e eletrodensos, provavelmente representando precipitação mineral nas paredes dos vasos, que demonstramos anteriormente inibir a ligação de anticorpos 41 , 80 , 88 , 128. A Figura S6 m–p das Informações Suplementares também mostra regiões eletrodensas (escuras em BF, brilhantes em HAADF) em vasos recuperados de MOR 1125. Os anticorpos marcados se localizam no material menos eletrodenso, mas ainda mostram extrema seletividade para regiões específicas da parede do vaso.
De forma semelhante, MOR 1126 (Informações Suplementares, Fig. S6 q–t) e MOR 1128 (Informações Suplementares, Fig. S6 u–x) mostram que a ligação se limita a regiões translúcidas a elétrons, mas poucas partículas são observadas associadas a porções cristalinas. Cristais minerais podem ser vistos na parte inferior esquerda da Fig. S6 w, x das Informações Suplementares, mas nenhuma ligação de anticorpo é observada nessa região.
Em todos os casos, a ligação do anticorpo foi menor do que em vasos sanguíneos de avestruz atuais (Informações Suplementares, Fig. S6 y–bb), o que está de acordo com os padrões de ligação observados na IHC (Fig. 4 ).
ToF-SIMS combinado com FEG-SEM
Utilizamos a técnica ToF-SIMS em combinação com imagens FEG-SEM para investigar independentemente a presença de materiais proteicos nas estruturas semelhantes a vasos. Em todas as amostras, peptídeos/proteínas foram detectados pela presença de íons secundários típicos relacionados a proteínas (Informações Suplementares, Fig. S7 a–c).
Esses íons fragmentados contendo nitrogênio ocorrem com alta intensidade de sinal nos espectros de íons positivos de proteínas e peptídeos puros 117 , 117 , 119 e geralmente compreendem o grupo lateral de um aminoácido específico juntamente com a porção CN da cadeia principal do peptídeo 117. Esses mesmos íons também ocorrem nos espectros ToF-SIMS de aminoácidos livres, mas, importante ressaltar, os aminoácidos livres também geram picos comparativamente intensos correspondentes a íons moleculares intactos 133 , que estão notavelmente ausentes nos espectros de peptídeos/proteínas.
Aqui, a identificação de peptídeos/proteínas nas amostras do vaso é baseada em: (1) a observação e atribuição combinadas de picos nos espectros fósseis a todos os principais íons fragmentos contendo N associados a proteínas em alta resolução de massa (Informações Suplementares, Fig. S7 a); (2) distribuições de intensidade comparáveis desses íons nos espectros fósseis, consistentes com peptídeos/proteínas (Informações Suplementares Fig. S7b, c); (3) ausência de picos correspondentes a aminoácidos livres intactos (Informações Suplementares, Fig. S7 d); e (4) ausência de outros fragmentos orgânicos principais contendo N nos espectros ToF-SIMS.
Íons fragmentados relacionados a proteínas foram observados em regiões específicas e bem delimitadas nas superfícies fósseis, que, de outra forma, eram dominadas por minerais contendo ferro e fosfato (Fig. 5 a–d e Fig. S8–S12 das Informações Suplementares). Em MOR 1126 (Fig. 5 a–d), análises subsequentes por MEV-FEG revelaram que os íons fragmentados de peptídeos/proteínas se originavam de material em forma de lâmina que parecia estar subjacente a uma camada fibrosa e com porosidade variável (Fig. 5 d, asterisco).
Esta última era dominada por minerais contendo ferro/fosfato e apresentava características morfológicas (por exemplo, um padrão de bandas de ~ 68 nm; Fig. 5 d, pontas de seta) consistentes com fibras de colágeno e estruturas celulares semelhantes a osteócitos (Fig. 5 c, pontas de seta), o que pode indicar deposição mineral exógena ou substituição secundária dos materiais originalmente orgânicos. Íons de fragmentos de proteína foram detectados em áreas onde a camada porosa/fibrosa havia sido fragmentada ou removida involuntariamente durante o processo de preparação da amostra, expondo a matéria subjacente em forma de lâmina do tecido vascular.

Detecção de proteínas em vasos fósseis por ToF-SIMS. Sobreposição da imagem TOF-SIMS de MOR 1126 ( a, b ) mostrando a intensidade adicional de íons representando proteínas em verde e fosfato de ferro em vermelho.
( b ) Sobreposição da imagem ToF-SIMS (como em ( a )) e micrografia SEM da mesma área na superfície do vaso. ( c ) Imagem SEM como em ( b ).
As pontas de seta indicam estruturas semelhantes a osteócitos e a caixa amarela indica a área ampliada em ( d ). ( d ) Micrografia SEM ampliada destacando várias microestruturas: camada plana contendo proteína (*) localizada abaixo de uma camada inorgânica porosa (Δ), camada inorgânica porosa infiltrada com depósito sem estrutura (+) e filamentos semelhantes a fibras de colágeno (pontas de seta). ( e ) Gráfico de escores da PCA do espectro que inclui intensidades de íons fragmentados em espectros ToF-SIMS positivos de quatro proteínas de referência e ROIs ricas em proteínas nas superfícies dos vasos fósseis.
Os rótulos dos pontos de dados específicos indicam os espectros das ROIs exibidas na Fig. 5a e nas Informações Suplementares, Fig. S8–12, conforme marcado pelas linhas pontilhadas verdes. ( f ) Cargas do PC1 (superior) e do PC3 (inferior) da PCA como em ( e ), para os íons de fragmentos de proteína incluídos (os aminoácidos associados são indicados). As barras de escala são de 10 μm em ( a – c ) e de 1 μm em ( d ).
Além do material em forma de lâmina, sinais de proteína também foram observados em regiões onde uma massa amorfa parecia ter infiltrado a camada de ferro/fosfato, possivelmente indicando depósitos orgânicos associados à atividade microbiana (Fig. 5 d, '+'). Além disso, estruturas morfologicamente compatíveis com hifas fúngicas puderam ser vistas na superfície em forma de lâmina adjacente às áreas infiltradas da camada de ferro/fosfato, o que está de acordo com os padrões de coloração histoquímica.
Observações semelhantes foram feitas em todas as amostras fósseis; ou seja, detecção de peptídeos/proteínas em um material laminar localizado abaixo de uma camada porosa rica em ferro/fosfato (Informações Suplementares, Fig. S8a–d, S9a–d, S12a–d ), bem como em várias microestruturas de presumida origem microbiana (Informações Suplementares, Fig. S10a–d, S11a–d).
Por exemplo, em MOR 555/USNM 555000, peptídeos/proteínas foram identificados em aglomerados de corpos subesféricos exibindo características microbianas típicas (Informações Suplementares, Fig. S11d), e MOR 2598 apresentou proteínas localizadas em estruturas filiformes morfologicamente consistentes com hifas fúngicas (Informações Suplementares, Fig. S10c, d). Notavelmente, todas as amostras também mostraram a presença de peptídeos/proteínas em um material laminar sem qualquer associação aparente com bactérias ou fungos.
Além disso, para investigar se as origens dos materiais proteicos observados (endógenos versus microbianos) se refletem nos dados de ToF-SIMS, os espectros de regiões ricas em proteínas nas superfícies fósseis foram avaliados usando análise de componentes principais (PCA).
A PCA incluiu as intensidades de sinal de sete íons fragmentos de proteínas principais nos espectros de regiões de interesse (ROIs) das amostras fósseis, juntamente com os espectros de quatro amostras de referência de proteínas puras: hemoglobina, queratina, colágeno e elastina (Fig. 5 e, f). O gráfico de escores PC1–PC3 mostrou que os quatro padrões de proteína ocorrem na parte esquerda do gráfico. Eles estão ainda separados uns dos outros no quimioespaço, indicando diferenças significativas entre os espectros de ToF-SIMS.
Enquanto alguns dos espectros fósseis estão localizados nas proximidades das amostras de referência de proteínas, a maioria está situada no lado direito do gráfico (ou seja, com pontuações PC 1 mais altas), que, de acordo com as cargas do PC 1 (Fig. 5 f), correspondem a intensidades relativas mais altas de C 2 H 6 N + (Ala) e C 5 H 12 N + (Leu, Ile) e intensidades mais baixas de C 4 H 8 N + (Pro) e C 4 H 10 N + (Val) em relação às referências de proteínas modernas. A escala vertical no gráfico de escores (PC 3) corresponde principalmente às diferenças de intensidade relativa entre C 4 H 8 N + (Pro) e C 4 H 10 N + (Val) e está associada às diferenças espectrais entre as várias referências de proteínas.
Os pontos de dados rotulados no gráfico de escores (Fig. 5 e) correspondem a espectros adquiridos das microestruturas indicadas por linhas tracejadas na Fig. 5 a, b e Informações Suplementares, Figs. S8a, b–S12a, b. Notavelmente, os pontos de dados 5b, S8, S9 e S10a, todos associados a estruturas sem qualquer origem microbiana aparente, parecem estar localizados em uma região ligeiramente mais próxima das proteínas de referência, em comparação com 5a, S10b, S11a e S12b, que derivam de características microbianas suspeitas.
No entanto, essa aparente separação no quimioespaço não é isenta de exceções (por exemplo, o ponto de dados S12), indicando que as características espectrais incluídas na análise PCA (ou seja, os sete íons de fragmentos de proteína) são insuficientes para distinguir com segurança a matéria proteica endógena de peptídeos/proteínas de origem microbiana.
Discussão
Nosso conjunto abrangente de análises de imagem, ultraestruturais e moleculares detectou três componentes principais de restos vasculares recuperados de seis dinossauros não-avianos do Cretáceo (quatro tiranossaurídeos, um ceratopsiano e um hadrossauro, separados no tempo por pelo menos 10 milhões de anos): matéria orgânica endógena, estruturas de substituição secundária (depósitos minerais) e microrganismos invasores (por exemplo, hifas semelhantes a fungos, antigas ou modernas).
Também conseguimos eliminar o biofilme bacteriano moderno (ver 85 ) como a principal fonte das estruturas semelhantes a vasos, porque elas:
(1) eram texturalmente distintas, com uma superfície luminal diferente do exterior fibroso;
(2) mostraram semelhança micromorfológica com análogos existentes em múltiplos níveis de visualização;
(3) exibiram sequestro químico (revelado por diferenças de cor e textura em relação à matriz circundante em escala submicrométrica);
(4) eram ocas e mantiveram sua forma após a desmineralização; e
(5) exibiram padrões de ligação distintos e altamente específicos quando expostos a anticorpos relevantes;
todas as características não encontradas em estruturas bacterianas (ex.: biofilme) 113 .
Embora tenhamos detectado componentes microbianos nas amostras, nosso conjunto de amostras maior mostra que o osso analisado por Saitta et al. 91 não é representativo para tirar conclusões mais gerais sobre a retenção de moléculas endógenas no registro fóssil. Além disso, a invasão do osso fóssil por fungos ou bactérias reforça fortemente a presença de matéria orgânica no osso; os micróbios não crescem sem uma fonte orgânica. Finalmente, dois dos dinossauros usados no presente estudo forneceram anteriormente dados de sequência de proteínas consistentes com vertebrados, não com micróbios 14 .
Da mesma forma, ao incorporar fósseis de arenitos fluviais e siltitos, testamos até que ponto o ambiente deposicional atua como um preditor da preservação vascular. Vasos foram recuperados de cada espécime de dinossauro analisado neste estudo, embora estes variassem em fidelidade tanto nos níveis morfológico (Figs. 1 , 2 e 3 e Informações Suplementares, Fig. S2 ) quanto molecular (Fig. 4 e Informações Suplementares, Figs. S3, S6, S7 ).
Portanto, condições de sepultamento altamente específicas não parecem ser um requisito para que pelo menos a integridade estrutural dos vasos seja mantida ao longo do tempo geológico. No entanto, embora a morfologia frequentemente preservada tenha revelado heterogeneidade estrutural nas paredes dos vasos, estas eram predominantemente mineralizadas secundariamente, assim como os osteócitos e feixes de fibras de colágeno circundantes.
É importante ressaltar, porém, que os componentes inorgânicos estavam sempre associados a um complemento orgânico que apresentava características da parede original do vaso, sugerindo que os antigos restos vasculares representam, de fato, vasos sanguíneos fossilizados ( contra 85 , 91 ). Os dados aqui apresentados apoiam, portanto, a hipótese de que a preservação das estruturas orgânicas endógenas pode ser melhorada pela associação com o mineral ósseo 81 .
As relações filogenéticas e os processos evolutivos podem ser potencialmente explorados em nível molecular em fósseis, e isso foi tentado recentemente através da análise de tecidos duros de dinossauros utilizando espectroscopia Raman 55 , 93 , 134 , 135. A abordagem científica empregada por Wiemann e colegas baseia-se na premissa de que a matéria orgânica antiga (incluindo todas as proteínas) foi transformada em produtos finais avançados de glicoxidação e lipoxidação; estes retêm sinais moleculares originais que podem ser medidos por espectroscopia Raman, permitindo, por sua vez, inferências sobre o estado filogenético, metabólico e/ou fisiológico de organismos extintos. No entanto, surgiram preocupações quanto à autenticidade dos espectros obtidos 136 (ver também 137 ) e se estes representam assinaturas fósseis reais ou artefatos instrumentais 138.
Da mesma forma, a interpretação de alguns dos dados foi questionada 139 (ver também 140 ) e, para agravar ainda mais essas questões, a Análise de Componentes Principais (PCA) foi empregada por Wiemann et al. 55 , 93 , 135 e Norell et al. 134 para apoiar a endogeneidade dos espectros adquiridos, apesar do risco de introduzir inadvertidamente artefatos que poderiam potencialmente distorcer esses dados em favor de uma interpretação desejada 141 .
Os resultados de nossa extensa investigação adicionam mais um nível de incerteza, visto que a matéria orgânica original sempre esteve associada a um complemento microbiano, o que inquestionavelmente afetaria qualquer investigação por espectroscopia Raman (já que esta se baseia em medições em massa). Isso é particularmente relevante, pois nossas amostras provêm das mesmas formações e unidades rochosas, ou diretamente comparáveis, às dos fósseis analisados por Wiemann et al. 55 , 93 , 140.
Consequentemente, incentivamos o uso de múltiplas técnicas analíticas complementares ao examinar materiais fósseis de tempos remotos e alertamos para a necessidade de cautela ao inferir aspectos de, por exemplo, filogenia e fisiologia, unicamente a partir de dados Raman ou, de fato, de qualquer técnica isolada.
Conclusões
Neste trabalho, testamos três hipóteses:
(1) os vasos são endógenos aos dinossauros dos quais derivam;
(2) o ambiente deposicional é um preditor da preservação vascular; e
(3) a integridade vascular em fósseis não depende da idade geológica ou do táxon.
As evidências da endogeneidade das estruturas vasculares em ossos de dinossauros não-avianos incluem a morfologia, utilizando múltiplas técnicas (microscopia óptica, microscopia eletrônica de varredura, microscopia eletrônica de transmissão e nanotomografia computadorizada) e resoluções, a presença de anastomoses, a continuidade das estruturas da parede vascular e a ligação de anticorpos in situ.
Além disso, a investigação combinada por espectrometria de massa de íons secundários por tempo de voo (ToF-SIMS) e microscopia eletrônica de varredura mostrou que os sinais de peptídeos/proteínas se originam de estruturas específicas nas superfícies dos fósseis, incluindo:
(1) uma camada laminar posicionada imediatamente abaixo de um substrato poroso de fibras de colágeno mineralizadas; e
(2) estruturas com evidente origem microbiana.
O ambiente deposicional não pareceu ser um fator determinante na capacidade de recuperar vasos dos ossos, uma vez que nossos espécimes derivam tanto de arenitos quanto de siltitos. No entanto, a preservação foi menos perfeita em uma amostra obtida de folhelho argiloso. Os espécimes estudados incluíam táxons de ornitísquios (ceratopsianos e hadrossaurianos) e saurísquios ( T. rex ), separados no tempo por cerca de 10 milhões de anos, indicando que nem a taxonomia, nem o tempo, nem o ambiente deposicional influenciam exclusivamente esse tipo de preservação.
O componente microbiano que detectamos por ToF-SIMS e MEV pode ter surgido de uma invasão contemporânea ou ser mais recente, seja quando os sedimentos estavam próximos à superfície ou após a remoção do ambiente de soterramento estabilizador. Foi demonstrado que os micróbios podem melhorar a preservação 142 , 143 , e essa possibilidade deve ser explorada mais a fundo ao se lidar com restos antigos.
Disponibilidade de dados
Todos os dados estão incluídos no texto principal ou nas informações suplementares, exceto os controles extensivos; esses dados estão disponíveis mediante solicitação à MHS.
Referências
Schweitzer, MH Preservação de tecidos moles em vertebrados terrestres do Mesozoico. Annu. Rev. Earth Planet. Sci. 39 , 187–216 (2011).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoLindgren, J. et al. Olhos de insetos fósseis lançam luz sobre a óptica dos trilobitas e a tela de pigmento dos artrópodes. Nature 573 , 122–125 (2019).
ANÚNCIOSCASPubMedMATEMÁTICAGoogle AcadêmicoLindgren, J. et al. Composição molecular e ultraestrutura de penas de paravianos do Jurássico. Nat. Sci. Rep. 5 , 13520 (2015).
CASMATEMÁTICAGoogle AcadêmicoBailleul, AM et al. Evidência de proteínas, cromossomos e marcadores químicos de DNA em cartilagem de dinossauro excepcionalmente preservada. Natl. Sci. Rev. 7 , 815–822 (2020).
CASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoZheng, X., Bailleul, AM, Li, Z., Wang, X. & Zhou, Z. Preservação nuclear na cartilagem do dinossauro Jehol Caudipteryx . Commun. Biol. 4 , 859 (2021).
Kjaer, KH et al. Um ecossistema de 2 milhões de anos na Groenlândia descoberto por DNA ambiental 1 2. Nature 612 , 458 (2022).
Cadena, EA & Schweitzer, MH Preservação de vasos sanguíneos e osteócitos em uma tartaruga pelomedusoide do Paleoceno da Colômbia. J. Herpetol. 48 , 461–465 (2014).
MATEMÁTICAGoogle AcadêmicoLindgren, J. et al. Evidência microespectroscópica de proteínas ósseas do Cretáceo. PLoS ONE 6 , e19445 (2011).
ANÚNCIOSCASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoLindgren, J. et al. Bioquímica e coloração adaptativa de uma tartaruga marinha fóssil juvenil excepcionalmente preservada. Sci. Rep. 7 , 1–13 (2017).
CASMATEMÁTICAGoogle AcadêmicoLindgren, J. et al. Evidências de tecido mole para homeotermia e cripsis em um ictiossauro jurássico. Nature 564 , 359–365 (2018).
ANÚNCIOSCASPubMedMATEMÁTICAGoogle AcadêmicoPan, Y. et al. A evolução molecular das penas com evidências diretas de fósseis. Proc. Natl. Acad. Sci. USA 116 , 3018–3023 (2019).
Pan, Y. et al. Evidência molecular de queratina e melanossomas em penas da ave do Cretáceo Inferior Eoconfuciusornis . Proc. Natl. Acad. Sci. USA . 113 , E7900–E7907 (2016).
CASPubMedPubMed CentralGoogle AcadêmicoCleland, TP, Schroeter, ER & Schweitzer, MH Modificações peptídicas derivadas biologicamente e diageneticamente em colágenos moa. Proc. R Soc. B Biol. Sci. 282 , 1–6 (2015).
Google AcadêmicoCleland, TP et al. Espectrometria de massa e caracterização baseada em anticorpos de vasos sanguíneos de Brachylophosaurus canadensis . J. Proteome Res. 14 , 5252–5262 (2015).
CASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoSchroeter, ER et al. Expansão da sequência de colágeno I de Brachylophosaurus canadensis e evidências adicionais da preservação da proteína do Cretáceo. J. Proteome Res. 16 , 920–932 (2017).
CASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoSenter, PJ Células e tecidos moles em ossos fósseis: uma revisão dos mecanismos de preservação, com correções de equívocos. Paleontol. Electron. https://doi.org/10.26879/1248 (2022).
Anderson, BG, Lucas, SG, Barrick, RE, Heckert, AB & Basabilvazo, GT Impressões de pele de dinossauro e restos esqueléticos associados do Campaniano Superior do sudoeste do Novo México: novos dados sobre a morfologia do tegumento de hadrossauros. J. Vertebr Paleontol. 18 , 739–745 (1998).
Google AcadêmicoFabbri, M., Wiemann, J., Manucci, F. & Briggs, DEG Preservação tridimensional de tecido mole revelada na pele de um dinossauro não-aviano. Palaeontology 63 , 185–193 (2020).
Evans, SE & Wang, Y. Um novo lagarto (Reptilia: Squamata) com preservação requintada de tecido mole do Cretáceo Inferior da Mongólia Interior, China. J. Syst. Palaeontol. 8 , 81–95 (2010).
Google AcadêmicoEvans, SE, Wang, Y. & Jones, MEH Uma agregação de esqueletos de lagartos do Cretáceo Inferior da China. Senckenb. Lethaea 87 , 109–118 (2007).
MATEMÁTICAGoogle AcadêmicoXing, L. et al. Uma cauda de dinossauro emplumada com plumagem primitiva presa em âmbar do Cretáceo Médio. Curr. Biol. 26 , 3352–3360 (2016).
CASPubMedMATEMÁTICAGoogle AcadêmicoSchopf, JW & Walter, MR Microfósseis arqueanos: novas evidências de micróbios antigos. In: A Biosfera Mais Antiga da Terra: Sua Origem e Evolução (org. Schopf, JW) 220-222 (Princeton University Press, 2022).
Lingham-Soliar, T. Preservação rara de tecido mole mostrando estruturas fibrosas em um ictiossauro do Lias Inferior (Jurássico) da Inglaterra. Proc. R Soc. B Biol. Sci. 266 , 2367–2373 (1999).
MATEMÁTICAGoogle AcadêmicoQiang, J., Currie, PJ, Norell, MA & Shu-an, J. Dois dinossauros emplumados do nordeste da China. Nature 393 , 753–761 (1998).
Ji, SA & Bo, HC Descoberta das impressões de pele de psitacosaurídeos e seu significado. Geol. Rev. 44 , 603–606 (1998).
Google AcadêmicoLindgren, J., Alwmark, C., Caldwell, MW & Fiorillo, AR Pele do mosassauro cretáceo Plotosaurus : implicações para adaptações aquáticas em répteis marinhos gigantes. Biol. Lett. 5 , 528–531 (2009).
PubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoDal Sasso, C. & Signore, M. Preservação excepcional de tecidos moles em um dinossauro terópode da Itália. Nature 392 , 383–387 (1998).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoEliason, CM, Hudson, L., Watts, T., Garza, H. & Clarke, JA Preservação excepcional e o registro fóssil do tegumento dos tetrápodes. Proc. R. Soc. B Biol. Sci. 284 , 1–9 (2017).
Mayr, G., Peters, DS, Plodowski, G. & Vogel, O. Estruturas tegumentares semelhantes a cerdas na cauda do dinossauro com chifres Psiffacosaurus . Naturwissenschaften 89 , 361–365 (2002).
ANÚNCIOSCASPubMedGoogle AcadêmicoChiappe, LM & Dyke, GJ A radiação mesozoica das aves. Annu. Rev. Ecol. Syst. 33 , 91–124 (2002).
Google AcadêmicoCurrie, PJ & Chen, P. Anatomia de Sinosaurpteryx prima de Liaoning, nordeste da China. Can. J. Earth Sci. 38 , 1705–1727 (2001).
ANÚNCIOSMATEMÁTICAGoogle AcadêmicoNorell, MA, Xu, X. & Dinossauros emplumados. Annu. Rev. Earth Planet. Sci. 33 , 277–299. https://doi.org/10.1146/annurev.earth.33.092203.122511 (2005).
Poinar, JGO, Poinar, HN & Cano, RJ. Amostras fixadas e embutidas: DNA de inclusões em âmbar. Em DNA antigo (orgs. Herrmann, B. & Hummel, S.) 92–103 (Springer, 1994).
Vitek, NS, Vinther, J., Schiffbauer, JD, Briggs, DEGG & Prum, RO Preservação tridimensional e coloração excepcionais de uma pena fóssil originalmente iridescente do xisto betuminoso de Messel do Eoceno Médio. Palaontologische Z. 87 , 493–503 (2013).
Google AcadêmicoCadena, E. & Schweitzer, MH Variação na morfologia dos osteócitos versus tipo ósseo na carapaça de tartaruga e sua preservação excepcional do Jurássico até o presente. Bone 51 , 614–620 (2012).
PubMedGoogle AcadêmicoSchweitzer, MH, Wittmeyer, JL & Horner, JR Preservação de tecidos moles e celulares em elementos esqueléticos de vertebrados do Cretáceo até o presente. Proc. R Soc. Lond. B 274 , 183–197 (2007).
Google AcadêmicoSchweitzer, MH, Zheng, W., Cleland, TP & Bern, M. Análises moleculares de osteócitos de dinossauros apoiam a presença de moléculas endógenas. Bone 52 , 414–423 (2013).
CASPubMedGoogle AcadêmicoBertazzo, S. et al. Fibras e estruturas celulares preservadas em espécimes de dinossauros de 75 milhões de anos. Nat. Commun. 6 , 7485 (2015).
Pawlicki, R. Demonstração histoquímica de DNA em osteócitos de ossos de dinossauro. Folia Histochem. Cytobiol. 33 , 183–186 (1995).
PubMedMATEMÁTICAGoogle AcadêmicoNowicki, Z., Sarnecka-Keller, M., Pawlicki, R., Kubiak, H. & Korbel, A. Análise morfológica e química da estrutura do osso fóssil de dinossauro. Anat. Anz 132 , 10–23 (1972).
PubMedGoogle AcadêmicoBoatman, EM et al. Análise química e estrutural por sincrotron de vasos sanguíneos de Tyrannosaurus rex: a contribuição da hiperligação cruzada do colágeno para a longevidade do tecido. Microsc. Microanal. 20 , 1430–1431 (2014).
MATEMÁTICAGoogle AcadêmicoSan Antonio, JD et al. Peptídeos de dinossauro sugerem mecanismos de sobrevivência de proteínas. PLoS ONE 6 , e20381 (2011).
ANÚNCIOSCASPubMedPubMed CentralGoogle AcadêmicoLindgren, J. et al. Preservação molecular do pigmento melanina em melanossomas fósseis. Nat. Commun. 3 , 1–7 (2012).
MATEMÁTICAGoogle AcadêmicoGlass, K. et al. Impacto da diagênese e maturação na sobrevivência da eumelanina no registro fóssil. Org. Geochem. 64 , 29–37 (2013).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoGlass, K. et al. Evidência química direta do pigmento eumelanina do período jurássico. Proc. Natl. Acad. Sci. USA 109 , 10218–10223 (2012).
ANÚNCIOSCASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoColleary, C. et al. Evidências químicas, experimentais e morfológicas de melanina diageneticamente alterada em fósseis excepcionalmente preservados. Proc. Natl. Acad. Sci. USA 112 , 12592–12597 (2015).
ANÚNCIOSCASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoVinther, J. Reconstruindo a paleocoloração dos vertebrados. Annu. Rev. Earth Planet. Sci. 48 , 345–375 (2020).
ANÚNCIOSCASGoogle AcadêmicoSchweitzer, M. et al. (ed, H.) Compostos heme em osso trabecular de dinossauro. Proc. Natl. Acad. Sci. USA 94 6291–6296 (1997).
ANÚNCIOSCASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoZhang, F. et al. Melanossomas fossilizados e a cor de dinossauros e aves do Cretáceo. Nature 463 , 1075–1078 (2010).
ANÚNCIOSCASPubMedMATEMÁTICAGoogle AcadêmicoVinther, J., Briggs, DEGG, Clarke, JA, Mayr, G. & Prum, RO Coloração estrutural em uma pena fóssil. Biol. Lett. 6 , 128–131 (2010).
PubMedGoogle AcadêmicoLi, Q. et al. Padrões de cores da plumagem de um dinossauro extinto. Sci. (80-) 327 , 1369–1372 (2010).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoBarden, HE et al. Evidências morfológicas e geoquímicas da preservação da eumelanina nas penas da ave do Cretáceo Inferior, Gansus yumenensis . PLoS One 6 , 859 (2011).
Martin, E. Pigmentos fósseis e organelas pigmentares - coloração em tempos remotos 1–26 (2012).
Wiemann, J. et al. Os ovos azul-esverdeados dos dinossauros: como os metabólitos fósseis fornecem informações sobre a evolução da reprodução das aves. PeerJ Prepr. 2015 , 1–18. https://doi.org/10.7287/peerj.preprints.1080 (2015).
Wiemann, J. et al. A fossilização transforma proteínas de tecido duro de vertebrados em polímeros N-heterocíclicos. Nat. Commun. 9 , 4741 (2018).
Dennis, JE, Carrino, DA, Yamashita, K. & Caplan AI Anticorpos monoclonais para moléculas da matriz mineralizada da casca do ovo de aves. Matrix Biol. 19 , 683–692 (2000).
Schweitzer, MH et al. Caracterização biomolecular e sequências de proteínas do hadrossauro campaniano B. canadensis . Sci. (80-) 324 , 626–631 (2009).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoBuckley, M., Larkin, N. & Collins, MJ Sequências de colágeno de mamute e mastodonte; sobrevivência e utilidade. Geochim. Cosmochim. Acta 75 , 2007–2016 (2011).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoSchweitzer, MH, Hill, CL, Asara, JM, Lane, WS & Pincus, SH Identificação de material imunorreativo em fósseis de mamute. J. Mol. Evol. 55 , 696–705 (2002).
ANÚNCIOSCASPubMedGoogle AcadêmicoAvci, R. et al. Preservação do colágeno ósseo do período Cretáceo tardio estudada por técnicas imunológicas e microscopia de força atômica. Langmuir 21 , 3584–3590 (2005).
CASPubMedMATEMÁTICAGoogle AcadêmicoMoyer, AE, Zheng, W. & Schweitzer, MH Durabilidade da queratina tem implicações para o registro fóssil: resultados de um experimento de degradação de penas de 10 anos. PLoS ONE 11 , 1–13 (2016).
Google AcadêmicoSchweitzer, MH et al. Imunorreatividade da queratina na ave do Cretáceo Superior Rahonavis ostromi . J. Vertebr Paleontol. 19 , 712–722 (1999).
Google AcadêmicoSchweitzer, MH et al. Reatividade imunológica específica da beta-queratina em estruturas semelhantes a penas do alvarezsaurídeo cretáceo, Shuvuuia deserti . J. Exp. Zool. 285 , 146–157 (1999).
CASPubMedGoogle AcadêmicoBailleul, AM et al. Um enantiornithine (Aves) do Cretáceo Inferior preservando um ovo não posto e provável osso medular. Nat. Commun. 10 , 1–10 (2019).
CASMATEMÁTICAGoogle AcadêmicoSchweitzer, MH, Zheng, W., Moyer, AE, Sjövall, P. & Lindgren, J. Potencial de preservação da queratina em tempos remotos. PLoS One 13 , 1–17 (2018).
Google AcadêmicoBuckley, M. et al. Comentário sobre 'sequências de proteínas de mastodonte e Tyrannosaurus Rex reveladas por espectrometria de massa'. Sci. (80-) 319 , 33c (2008).
ANÚNCIOSGoogle AcadêmicoWadsworth, C. et al. Comparação da sobrevivência do DNA antigo e do conteúdo do proteoma em 69 amostras arqueológicas de dentes e ossos de bovinos de múltiplos sítios europeus. J. Proteom. 158 , 1–8 (2017).
CASMATEMÁTICAGoogle AcadêmicoBuckley, M., Warwood, S., van Dongen, B., Kitchener, AC & Manning, PL Uma quimera de proteína fóssil; dificuldades em discriminar sequências de peptídeos de dinossauros da contaminação cruzada moderna. Proc. R. Soc. B Biol. Sci. 2017 , 284 (2017).
Briggs, DEG & Summons, RE Biomoléculas antigas: suas origens, fossilização e papel na revelação da história da vida. BioEssays 36 , 482–490 (2014).
CASPubMedGoogle AcadêmicoBriggs, DEGG, Evershed, RP & Lockheart, MJ A paleontologia biomolecular de fósseis continentais. Paleobiologia 26 , 169–193 (2000).
MATEMÁTICAGoogle AcadêmicoWitkowski, C. et al. Preservação molecular de lagersttten fósseis de coníferas cenozóicas da Ilha Banks, no Ártico canadense. Palaios 27 , 279–287 (2012).
ANÚNCIOSMATEMÁTICAGoogle AcadêmicoGrimaldi, DA, Engel, MS & Nascimebe, PC Âmbar cretáceo fossilífero de Myanmar (Birmânia): sua redescoberta, diversidade biótica e significado paleontológico. Am. Museum Novit 3361 , 1–71 (2002).
MATEMÁTICAGoogle AcadêmicoHofreiter, M. et al. Nat. Rev. 2 , 353–359 (2001).
van der Valk, T. et al. DNA de milhões de anos lança luz sobre a história genômica dos mamutes. Nature 591 , 265–269 (2021).
ANÚNCIOSPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoWolkenstein, K., Gross, J. & Falk, H. Pigmentos orgânicos contendo boro de uma alga vermelha jurássica. Proc. Natl. Acad. Sci. 107 , 19374–19378 (2010).
ANÚNCIOSCASPubMedPubMed CentralGoogle AcadêmicoWolkenstein, K., Gross, JH, Falk, H. & Schöler, HF Preservação de hipericina e pigmentos de quinona policíclica relacionados em crinoides fósseis. Proc. R. Soc. B Biol. Sci. 273 , 451–456 (2006).
Cody, GD et al. Assinatura molecular do complexo quitina-proteína em artrópodes paleozoicos. Geology 39 , 255–258 (2011).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoLindgren, J. et al. A pigmentação da pele fornece evidências de melanismo convergente em répteis marinhos extintos. Nature 506 , 484–488 (2014).
ANÚNCIOSCASPubMedMATEMÁTICAGoogle AcadêmicoManning, PL et al. Remanescentes de pigmento de feomelanina mapeados em fósseis de um mamífero extinto. Nat. Commun. 10 , 1–13 (2019).
MATEMÁTICAGoogle AcadêmicoSchweitzer, M. et al. Um papel para a química do ferro e do oxigênio na preservação de tecidos moles, células e moléculas de tempos remotos. Proc. R Soc. B Biol. Sci. 281 , 1–10 (2013).
Google AcadêmicoDemarchi, B. et al. Sequências de proteínas ligadas a superfícies minerais persistem em tempos profundos. Elife 5 , 478 (2016).
MATEMÁTICAGoogle AcadêmicoSaitta, ET, Kaye, TG & Vinther, J. Maturação envolta em sedimentos: um novo método para simular a diagênese na preservação de fósseis orgânicos. Palaeontology 62 , 135–150 (2019).
Google AcadêmicoWadsworth, C. & Buckley, M. Degradação do proteoma em fósseis: investigando a longevidade da sobrevivência de proteínas em ossos antigos. Rapid Commun. Mass. Spectrom. 28 , 605–615 (2014).
ANÚNCIOSCASPubMedPubMed CentralGoogle AcadêmicoSaitta, E. et al. (ed, T.) Vida dentro de um osso de dinossauro: um microbioma próspero. BioRxiv 2018 , 1–42. https://doi.org/10.1101/400176 (2018).
Kaye, TG, Gaugler, G. & Sawlowicz, Z. Tecidos moles de dinossauros interpretados como biofilmes bacterianos. PLoS One 3 , 1–7 (2008).
Google AcadêmicoSaitta, ET et al. Baixo potencial de fossilização da proteína queratina revelado pela tafonomia experimental. Palaeontology 60 , 547–556 (2017).
MATEMÁTICAGoogle AcadêmicoAnné, J., Canoville, A., Edwards, NP, Schweitzer, MH & Zanno, LE. Evidência independente da preservação da bioquímica óssea endógena em um espécime de Tyrannosaurus rex . Biol. (Basel) 2023 , 12 (2023).
Schweitzer, MH, Zheng, W., Cleland, TP & Bern, MW Análises moleculares de osteócitos de dinossauros apoiam a presença de moléculas endógenas. Bone 52 , 414–423 (2013).
CASPubMedGoogle AcadêmicoSchweitzer, MH et al. Caracterização biomolecular e sequências de proteínas do hadrossauro campaniano Brachylophosaurus canadensis . Sci. (80-) 324 , 626–629 (2009).
ANÚNCIOSCASMATEMÁTICAGoogle AcadêmicoSaitta, ET & Vinther, J. Uma perspectiva sobre a evidência de preservação da proteína queratina em fósseis: uma questão de replicação versus validação. Paleontol. Electron. 2019 , 1–30. https://doi.org/10.26879/1017E (2019).
Saitta, ET et al. Ossos de dinossauros do Cretáceo contêm material orgânico recente e fornecem um ambiente propício para comunidades microbianas. Elife 8 , 1456 (2019).
MATEMÁTICAGoogle AcadêmicoTuinstra, L. et al. Evidência de colágeno endógeno em osso fóssil de Edmontosaurus . Anal. Chem. https://doi.org/10.1021/acs.analchem.4c03115 (2025).
Wiemann, J., Crawford, JM & Briggs, DEG Sinais filogenéticos e fisiológicos em biomoléculas fósseis de metazoários. Sci. Adv. 6 , 1–11 (2020).
Google AcadêmicoTripp, M. et al. Biomarcadores fósseis e bioassinaturas preservadas em coprólitos revelam dietas carnívoras no ecossistema carbonífero de Mazon Creek. Biol. (Basel) 11 , 1289 (2022).
Eble, J. & Niland, S. A matriz extracelular dos vasos sanguíneos. Curr. Pharm. Des. 15 , 1385–1400 (2009).
CASPubMedMATEMÁTICAGoogle AcadêmicoHohenester, E. & Yurchenco, PD Lamininas na montagem da membrana basal. Cell. Adhes. Migr. 7 , 56–63 (2013).
MATEMÁTICAGoogle AcadêmicoGökçinar-Yagci, B., Uçkan-Çetinkaya, D. & Çelebi-Saltik, B. Pericitos: propriedades, funções e aplicações em engenharia de tecidos. Stem Cell. Rev. Rep. 11 , 549–559 (2015).
PubMedGoogle AcadêmicoUshiki, T. Fibras de colágeno, fibras reticulares e fibras elásticas. Uma compreensão abrangente do ponto de vista morfológico. Arch. Histol. Cytol. 65 , 109–126 (2002).
PubMedMATEMÁTICAGoogle AcadêmicoYurchenco, PD, O'Rear, J. & Rohrbach, DH & Timpl, G. Organização supramolecular das membranas basais. Em Aspectos moleculares e celulares das membranas basais. (eds. Rohrbach, DH & TImpl, R.) 19–47 (Academic, 1993).
Liliensiek, SJ, Nealey, P. & Murphy, CJ Caracterização da nanotopografia da membrana basal endotelial em macaco rhesus como guia para engenharia de tecido vascular. Tissue Eng. Part. A 15 , 2643–2651 (2009).
CASPubMedPubMed CentralGoogle AcadêmicoZarkovic, K. et al. Envelhecimento da elastina e produtos de oxidação lipídica na aorta humana. Redox Biol. 4 , 109–117 (2015).
CASPubMedMATEMÁTICAGoogle AcadêmicoKalluri, R. Membranas basais: estrutura, montagem e papel na angiogênese tumoral. Nat. Rev. Cancer 3 , 422–433 (2003).
CASPubMedMATEMÁTICAGoogle AcadêmicoGeudens, I. & Gerhardt, O. Coordenação do comportamento celular durante a formação de vasos sanguíneos. Development 138 , 4569–4583 (2011).
CASPubMedMATEMÁTICAGoogle AcadêmicoHallmann, R. et al. O papel das lamininas da membrana basal na função vascular. Int. J. Biochem. Cell. Biol. 127 , 105823 (2020).
CASPubMedMATEMÁTICAGoogle AcadêmicoBrengle, BM et al. Um novo modelo de camundongo com haploinsuficiência de elastina destaca a importância da elastina para o desenvolvimento vascular e a regulação da pressão arterial. Matrix Biol. 117 , 1–14 (2023).
CASPubMedMATEMÁTICAGoogle AcadêmicoMecham, RP Métodos em biologia do tecido elástico: isolamento e purificação da elastina. Métodos 45 , 32–41 (2008).
CASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoWagenseil, JE & Mecham, RP Matriz extracelular vascular e mecânica arterial. Physiol. Rev. 89 , 957–989 (2009).
CASPubMedMATEMÁTICAGoogle AcadêmicoLuisetti, M. et al. Desmosina como biomarcador de degradação de elastina na DPOC: estado atual e direções futuras. Eur. Respir. J. 32 , 1146–1157 (2008).
CASPubMedMATEMÁTICAGoogle AcadêmicoMecham, RP & Foster, JA Um modelo estrutural para peptídeos com ligações cruzadas de desmosina. Biochem. J. 173 , 617–625 (1978).
CASPubMedPubMed CentralGoogle AcadêmicoThiriet, M. Parede do vaso. Em Biologia e Mecânica dos Fluxos Sanguíneos 359–393 (Springer US, 2008).
Gordon, SR & Essner, E. Localização de actina, miosina e laminina em vasos da retina do rato. Cell. Tissue Res. 244 , 583–589 (1986).
CASPubMedMATEMÁTICAGoogle AcadêmicoAkhtar, S., Meek, KM & James, V. Imunolocalização de elastina, colágeno tipo I e tipo III, fibronectina e vitronectina em componentes da matriz extracelular de cordas tendíneas da válvula mitral cardíaca normal e mixomatosa. Cardiovasc. Pathol. 8 , 203–211 (1999).
CASPubMedGoogle AcadêmicoSchweitzer, MH, Moyer, AE & Zheng, W. Testando a hipótese de biofilme como fonte de tecido mole e estruturas semelhantes a células preservadas em osso de dinossauro. PLoS ONE 11 , 1–18 (2016).
MATEMÁTICAGoogle AcadêmicoBuss, JL, Neuzil, J., Gellert, N., Weber, C. & Ponka, P. Análogos de piridoxal isonicotinoil hidrazona induzem apoptose em células hematopoiéticas devido às suas propriedades quelantes de ferro. Biochem. Pharmacol. 65 , 161–172 (2003).
CASPubMedGoogle AcadêmicoCleland, TP, Zheng, W., Zamdborg, L. & Schweitzer, MH Caracterização de vasos sanguíneos de Brachylophosaurus canadensis baseada em espectrometria de massa e anticorpos . J. Proteome. Res. 14 , 5252−5262. https://doi.org/10.1021/acs.jproteome.5b00675 (2012).
Wagner, MS & Castner, DG Caracterização de filmes de proteína adsorvidos por espectrometria de massa de íons secundários de tempo de voo com análise de componentes principais. Langmuir 17 , 4649–4660 (2001).
CASMATEMÁTICAGoogle AcadêmicoSamuel, NT, Wagner, MS, Dornfeld, KD & Castner, DG Análise de poli(aminoácidos) por espectrometria de massa de íons secundários de tempo de voo estático (TOF-SIMS). Surf. Sci. Spectra 8 , 163–184 (2002).
ANÚNCIOSGoogle AcadêmicoMuramoto, S. et al. Análise ToF-SIMS de proteínas adsorvidas: análise de componentes principais do efeito das espécies de íons primários nos padrões de fragmentação de proteínas. J. Phys. Chem. 115 , 24247–24255 (2011).
MATEMÁTICAGoogle AcadêmicoDe La Garza, RG et al. Uma tartaruga marinha ancestral de casco duro com um mosaico de pele macia e placas. Sci. Rep. 12 , 22655 (2022).
ANÚNCIOSPubMedMATEMÁTICAGoogle AcadêmicoPerktold, K. et al. Dinâmica de fluidos, mecânica da parede e transferência de oxigênio em anastomoses de bypass periférico. Ann. Biomed. Eng. 30 , 447–460 (2002).
PubMedMATEMÁTICAGoogle AcadêmicoVito, RP & Dixon, SA Modelos constitutivos de vasos sanguíneos - 1995-2002. Annu. Rev. Biomed. Eng. 5 , 413–439 (2003).
CASPubMedMATEMÁTICAGoogle AcadêmicoAlberts, B., Johnson, A. & Lewis, J. Biologia Molecular da Célula (Garland Science, 2002).
Shadwick, RE Projeto mecânico em artérias. J. Exp. Biol. 202 , 3305–3313 (1999).
CASPubMedMATEMÁTICAGoogle AcadêmicoEpah, J. et al. Imagem 3D e análise quantitativa de redes vasculares: uma comparação de ultramicroscopia e microtomografia computadorizada. Theranostics 8 , 2117–2133 (2018).
CASPubMedPubMed CentralMATEMÁTICAGoogle AcadêmicoKampschulte, AM et al. Nanotomografia computadorizada: técnica e aplicações nanocomputertomografie: technik und applikationen. Fortschr. Röntgenstr. 188 , 146–154 (2016).
CASMATEMÁTICAGoogle AcadêmicoSalmon, PL & Sasov, AY Aplicação de nano-CT e micro-CT de alta resolução para estudar a qualidade e ultraestrutura óssea, biomateriais de suporte e redes vasculares. Adv. Bioimaging Technol. Assess. Qual. Bone Scaffold Mater. Tech. Appl. 2007 , 323–331. https://doi.org/10.1007/978-3-540-45456-4_19 (2007).
Witter, K., Tonar, Z. & Schöpper, H. Quantas camadas tem a adventícia? Estrutura da túnica externa arterial revisitada. J. Vet. Med. Ser. C Anat. Histol. Embryol. 46 , 110–120 (2017).
CASMATEMÁTICAGoogle AcadêmicoBoatman, EM et al. Mecanismos de preservação de tecidos moles e proteínas em Tyrannosaurus Rex . Sci. Rep. 9 , 1–12 (2019).
CASMATEMÁTICAGoogle AcadêmicoEyre, DR, Paz, MA & Gallop, PM Ligação cruzada em colágeno e elastina. Annu. Rev. Biochem. 53 , 717–748 (1983).
MATEMÁTICAGoogle AcadêmicoParija, SC, Shivaprakash, MR & Jayakeerthi, SR Avaliação do azul de algodão lactofenol (LPCB) para detecção de Cryptosporidium, Cyclospora e Isospora na preparação úmida de fezes. Acta Trop. 85 , 349–354 (2003).
CASPubMedGoogle AcadêmicoEricksen, B. Quantificação de polissacarídeos fixados em lâminas coradas por Gram usando azul de algodão lactofenol e processamento digital de imagem. F1000Research 4 , 1–18 (2017).
PubMed CentralMATEMÁTICAGoogle AcadêmicoWagner, GP Qual é a promessa da evolução do desenvolvimento? Parte II: uma explicação causal das inovações evolutivas pode ser impossível. J. Exp. Zool. 291 , 305–309 (2001).
CASPubMedMATEMÁTICAGoogle AcadêmicoKawecki, M. & Bernard, L. Banco de dados de espectros de referência de aminoácidos proteinogênicos para Bismuth-Cluster ToF-SIMS. II. Polaridade positiva. Surf. Sci. Spectra 25 , 1 (2018).
Norell, MA et al. O primeiro ovo de dinossauro era mole. Nature 583 , 406–410 (2020).
ANÚNCIOSCASPubMedMATEMÁTICAGoogle AcadêmicoWiemann, J. et al. Biomoléculas fósseis revelam um metabolismo aviário no dinossauro ancestral. Nature 606 , 522–526 (2022).
ANÚNCIOSCASPubMedMATEMÁTICAGoogle AcadêmicoAlleon, J. et al. Levando a espectroscopia Raman ao limite: supostas assinaturas de moléculas orgânicas em animais fósseis são artefatos instrumentais. BioEssays 43 , 1–7 (2021).
MATEMÁTICAGoogle AcadêmicoWiemann, J. & Briggs, DEG Validação de bioassinaturas confirma a natureza informativa dos espectros raman orgânicos fósseis. BioRxiv 2021 , 1–18 (2021).
Gold, RM, Carlson, DA, Vermeij, GJ & SJ & Metabolismo de amniotas e a evolução da endotermia. Nature 621 , E1–E3 (2023).
PubMedMATEMÁTICAGoogle AcadêmicoChoi, S., Yang, TR, Moreno-Azanza, M., Zhang, S. & Kim, NH Casca de ovo de sauropodomorfo triássico pode não ser macia. Nature 610 , E8–E10 (2022).
CASPubMedGoogle AcadêmicoWiemann, J. & Briggs, DEG A espectroscopia Raman é uma ferramenta poderosa em paleobiologia molecular: uma resposta analítica ao Alleon. BioEssays 44 , 20–22. https://doi.org/10.1002/bies.202000295 (2022).
CASMATEMÁTICAGoogle AcadêmicoElhaik, E. Resultados baseados em análises de componentes principais (PCA) em estudos de genética populacional são altamente enviesados e devem ser reavaliados. Sci. Rep. 2022 , 12 (2022).
Peterson, JE, Lenczewski, ME & Scherer, RP Influência de biofilmes microbianos na preservação de tecido mole primário em arcossauros fósseis e atuais. PLoS ONE 5 , e1334 (2010).
Briggs, DEGG O papel da decomposição e mineralização na preservação de fósseis de corpo mole. Annu. Rev. Earth Planet. Sci. 31 , 275–301 (2003).
ANÚNCIOSCASMATEMÁTICAGoogle Acadêmico
Agradecimentos
Este trabalho foi realizado em parte na Instalação de Instrumentação Analítica (AIF) da Universidade Estadual da Carolina do Norte, que é financiada pelo Estado da Carolina do Norte e pela Fundação Nacional de Ciência (nº ECCS-2025064). A AIF é membro da Rede de Nanotecnologia do Triângulo de Pesquisa da Carolina do Norte (RTNN), um local da Infraestrutura Nacional Coordenada de Nanotecnologia (NNCI). LA Anderson contribuiu para a obtenção das imagens de MEV. O financiamento (para MHS) foi fornecido por Lynn e Susan Orr, e Vance e Gayle Mullis (Mullis Analytics). O financiamento do Conselho Sueco de Pesquisa (contratos nº 2019-03731 e nº 2020-03542) também é reconhecido com gratidão (para PS e JL). Agradecemos ainda às agências e indivíduos que permitiram o acesso ou auxiliaram na recuperação das amostras, conforme segue: MOR 555 – Corpo de Engenheiros do Exército dos EUA; MOR 1125, 1126, 1128 – Serviço de Pesca e Vida Selvagem dos EUA (Refúgio de Vida Selvagem Charles M. Russell); MOR 2598 – Departamento de Recursos Naturais e Conservação de Montana; MOR 10857 – Sterling Carroll. Agradecemos também a Jack Horner, Bob Harmon, Scott Williams e às equipes de campo da MOR que escavaram esses espécimes. Agradecemos a Amy Atwater por facilitar o empréstimo do material da MOR 10857. Agradecemos a Carrie Ancell, Aleen Kienholz e Steve Phelps pela preparação dos espécimes.
Financiamento
Financiamento de acesso aberto fornecido pela Universidade de Lund.
Informações sobre o autor
Autores e Afiliações
Contribuições
MHS (autor correspondente) concebeu a abordagem experimental, elaborou algumas figuras e, juntamente com PS e JL, redigiu o artigo. PS e JL também realizaram e interpretaram todas as análises ToF-SIMS e estatísticas, e produziram todas as figuras relacionadas ao ToF-SIMS. WZ realizou o preparo das amostras e conduziu as imagens de microscopia (MO, MET) e os ensaios imunológicos (IG e IHC). ED e A. HR. realizaram e interpretaram os dados de nano-CT; JS forneceu acesso às amostras e contexto sedimentológico. Os autores declaram não haver conflitos de interesse.
Autor correspondente
Declarações éticas
Interesses conflitantes
Os autores declaram não haver conflitos de interesse.
Informações adicionais
Nota do editor
A Springer Nature mantém-se neutra em relação a reivindicações jurisdicionais em mapas publicados e afiliações institucionais.
Material suplementar eletrônico
Abaixo encontra-se o link para o material suplementar eletrônico.
Direitos e permissões
Acesso Aberto. Este artigo está licenciado sob a Licença Internacional Creative Commons Atribuição 4.0, que permite o uso, compartilhamento, adaptação, distribuição e reprodução em qualquer meio ou formato, desde que você dê o devido crédito ao(s) autor(es) original(is) e à fonte, forneça um link para a licença Creative Commons e indique se foram feitas alterações. As imagens ou outros materiais de terceiros neste artigo estão incluídos na licença Creative Commons do artigo, a menos que indicado de outra forma em uma linha de crédito para o material. Se o material não estiver incluído na licença Creative Commons do artigo e o seu uso pretendido não for permitido por lei ou exceder o uso permitido, você precisará obter permissão diretamente do detentor dos direitos autorais. Para visualizar uma cópia desta licença, visite http://creativecommons.org/licenses/by/4.0/ .
Sobre este artigo

Cite este artigo
Schweitzer, MH, Zheng, W., Dickinson, E. et al. Variação tafonômica em restos vasculares de dinossauros não-avianos do Mesozoico. Sci Rep 15 , 4359 (2025). https://doi.org/10.1038/s41598-025-85497-y
- Recebido
- Aceito
- Publicado
- Versão do registro
- DOIhttps://doi.org/10.1038/s41598-025-85497-y
2 -
3 -
Comentários
Postar um comentário